前言
疫情后的近三年以来,中国生物创新药获批品种大幅增加,药物形式,药物覆盖适应症逐步扩展。同时生产质量对纯度与安全性的要求也不断提高。
在已上市和在研蛋白类药物中,哺乳动物细胞表达系统占相当比例,尤以单抗、双抗、融合蛋白等需糖基化修饰的品种为主,其生产多以CHO(中国仓鼠卵巢细胞)及其衍生表达系统完成。原核表达系统仍占重要地位:重组细胞因子、激素、酶及疫苗抗原等结构相对简单、无需复杂翻译后修饰的品种,采用大肠杆菌(E.coli)表达,具有成本低、周期短、产量高的优势,一直是产业化的重要选择[1,2]。
大肠杆菌系统中应用最广泛的表达菌株为BL21(DE3)。该菌株为E.coli B株系衍生株,基因组中整合有λ噬菌体DE3区的T7 RNA聚合酶基因,配合pET系列载体,经IPTG或乳糖诱导即可实现外源蛋白的高效表达。该T7表达体系自1986年建立以来,至今仍是实验室与产业界最常用的重组蛋白表达系统[3,4]。
以E.coli(B系或K-12系菌株)为表达宿主的已上市代表药物,见下表1:
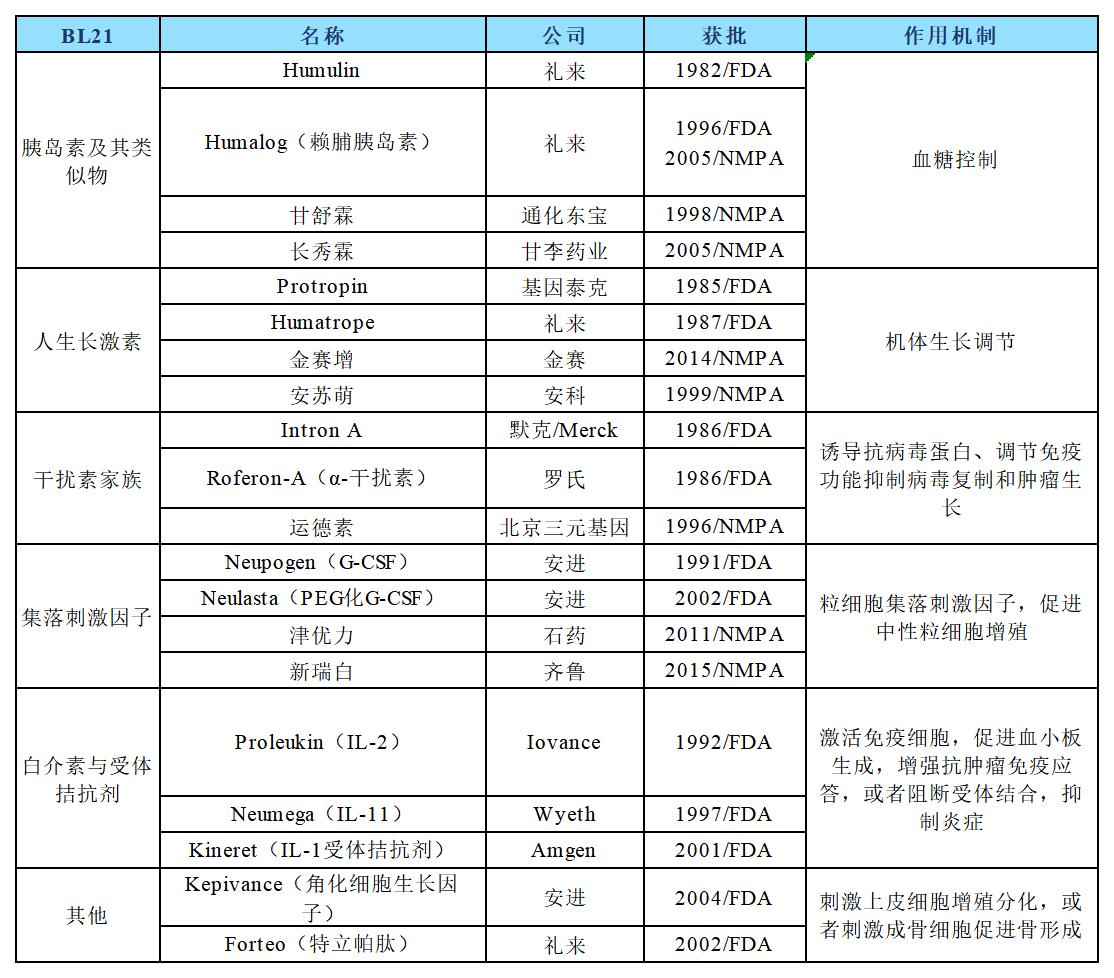
表1 E.coli菌株来源药
自1982年首支重组人胰岛素获批以来,E.coli系统在生物药领域持续应用,BL21(DE3)为其中代表性表达菌株。随着药物品种增多与监管要求细化,宿主细胞蛋白(HCP)残留控制的重要性日益突出。
介绍
1、结构
大肠杆菌为革兰氏阴性菌,其细胞壁结构由外膜(outer membrane)、薄层肽聚糖(peptidoglycan)和内膜(inner membrane)三层构成。外膜的最外层为脂多糖(LPS) ,LPS由O抗原(O-antigen)、核心寡糖(core region)和脂质A(lipid A)三部分组成[5]。结构见下图1:
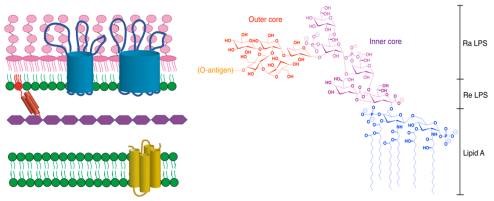
图1 E.coli菌株膜结构分型
Note:革兰氏阴性菌细胞包膜示意图(左)。LPS分子为粉色,磷脂为绿色,肽聚糖为紫色,外膜蛋白为蓝色,内膜蛋白为黄色,Braun脂蛋白为红色。大肠杆菌LPS的化学结构(右)。其中,Ra LPS和Re LPS是粗糙型LPS的两种极端形式:Ra代表拥有完整核心的“最长”形式,而Re则代表仅保留脂质A和KDO的“最短”形式。
其中,LPS核心区存在五种已知结构类型,分别命名为 K-12、R1、R2、R3和R4。这些核心型在不同系统发育群中的分布极不均匀:系统发育群A的菌株LPS核心型最为多样;群B1、D和E以R3型为主导;群B2和C以R1型为主导。值得注意的是,携带K-12型核心的B2群菌株全部属于STc131复合体——这是肠外致病性大肠杆菌(ExPEC)的主要克隆之一。见图2。
这一发现提示,LPS核心型并非随机分布,而是与菌株的系统发育背景和致病性基因谱存在紧密关联,细胞壁结构的差异本身即是大肠杆菌基因型分化的一个结构性标志[6,7]。
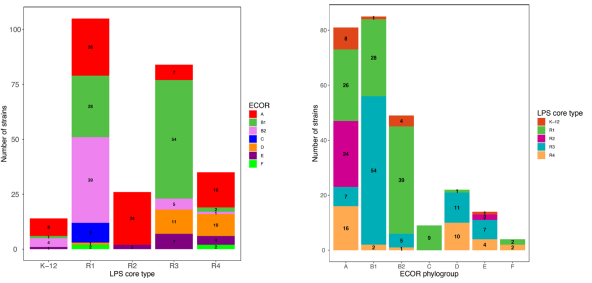
图2 LPS核心分型 图3 Clermont分型方法
2、 菌株分化
大肠杆菌种内存在广泛的遗传亚结构。Clermont分型方法(是一套通过PCR技术,对大肠杆菌(E. coli)进行快速、简便的系统发育群(phylo-group)分类的方案)。最初将大肠杆菌划分为A、B1、B2、D四个主要系统发育群。随着基因组数据的积累,目前已有八个系统发育群被确认:A、B1、B2、C、D、E、F七个属于大肠杆菌狭义种(E. coli sensu stricto),见图3,第八个为隐分支I(cryptic clade I,未展示)。
不同菌株间的基因组差异在实验室常用株中同样显著。E. coli B和K-12两大谱系虽具有超过99%的序列一致性(覆盖约92%的基因组),但在IS元件分布、大片段可移动元件的定位与组成、LPS核心与O抗原基因簇、以及限制酶系统等方面差异显著。药物生产中,常见的有BL21,DH5α,W3110和K12型等菌株。W3110与K12基因型最为相似[4,8]。见下图4:
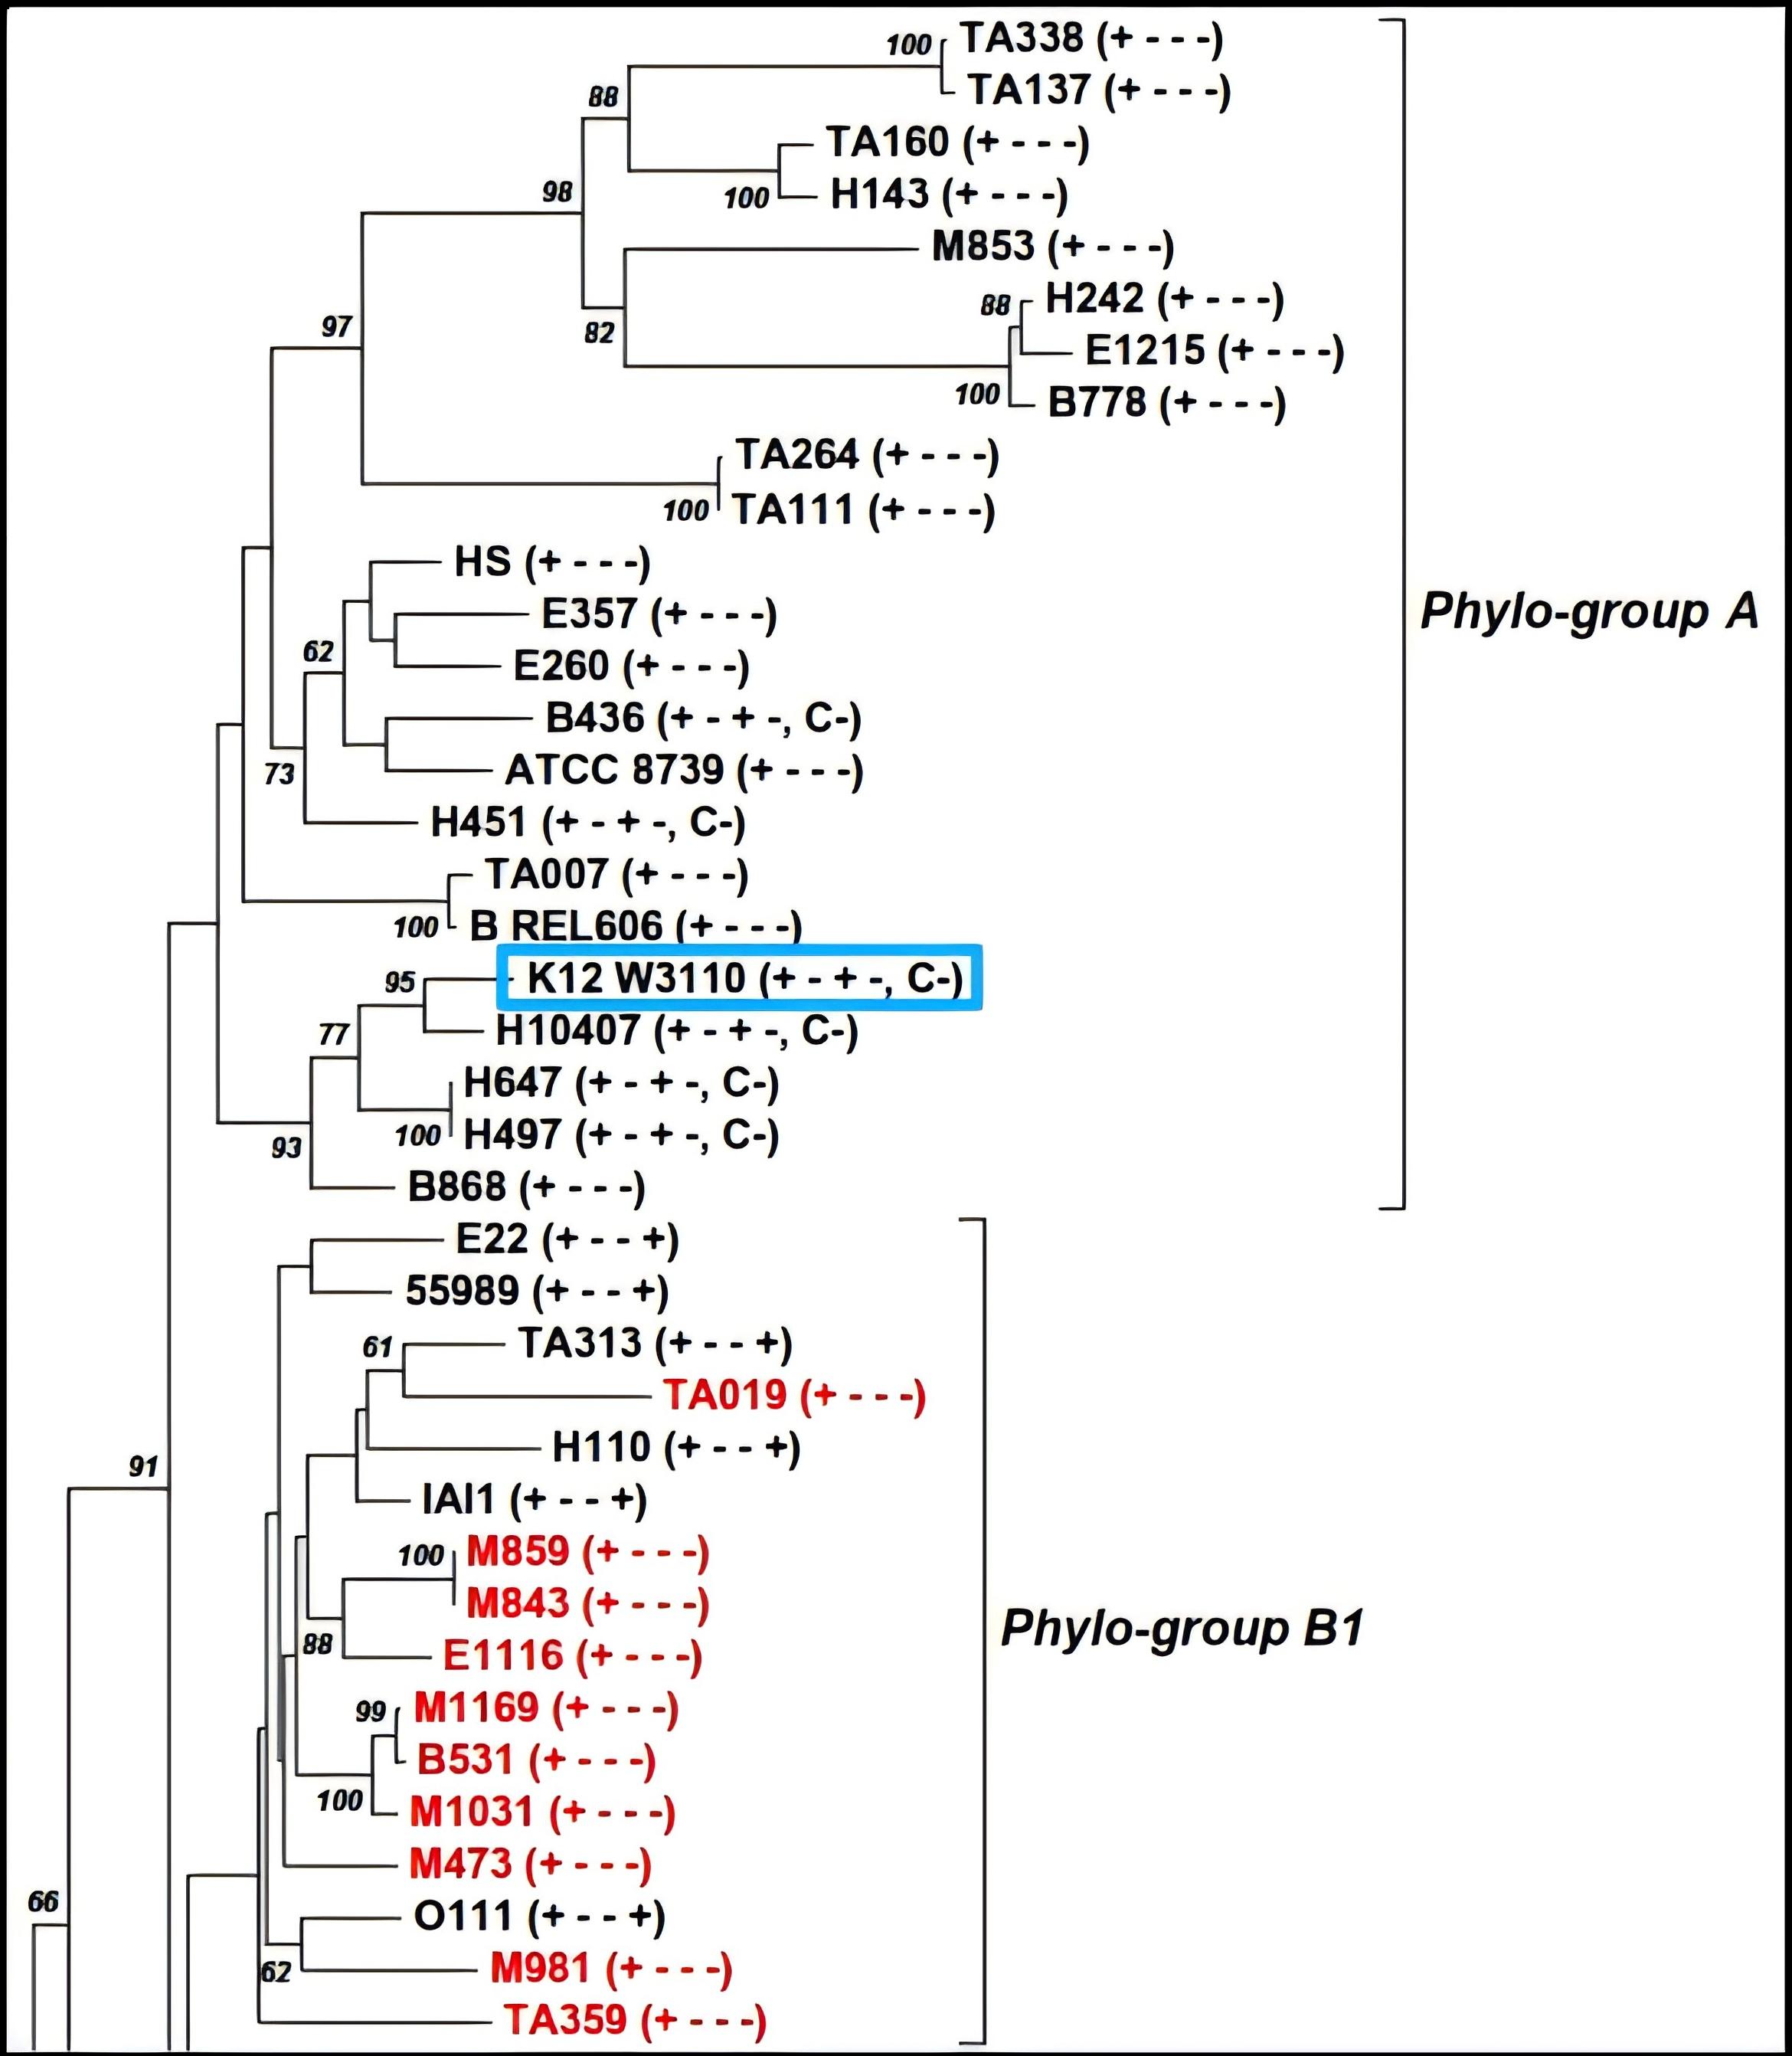
图4 E.coli菌株发育树
3、代谢差异
通常基因型的差异,会造成代谢和蛋白表达谱的巨大差异。有文献证实,菌株代谢能力的显著差异,与其基因型分化直接相关。
K-12菌株(如MG1655) 携带若干特征性突变,如ilvG、rph-1和rfb-50,这些突变对培养生长有负面影响。MG1655的基因组已被完整测序,基于其代谢基因型的in silico分析能够以86% 的准确率预测突变株的生长能力。
在葡萄糖代谢方面,B谱系与K-12谱系存在根本差异。K-12菌株(如JM109)是好氧高密度培养中乙酸大量积累的代表,而B菌株BL21是低乙酸生产者。Northern blot分析表明,K-12中的异柠檬酸裂解酶基因(aceA)和苹果酸合酶基因(aceB)几乎不转录,导致乙醛酸旁路(glyoxylate shunt) 失活。同时iclR(异柠檬酸裂解酶抑制子)持续转录。相反,BL21中aceA和aceB组成型转录,iclR不转录,因此乙醛酸旁路持续活跃。这种转录调控差异解释了BL21对高葡萄糖浓度不敏感、可生长至更高密度的代谢优势[9],见下方流程图5。所以,由于基因型的差异导致的高密度生长的能力,使BL21成了最常用的重组蛋白药物的表达系统之一。
图5 BL21 vs K12发酵优势比较
4、蛋白组差异
代谢的差异,是基因型的间接作用,同时是蛋白表达谱的直接作用。K-12和B两大谱系在蛋白质组水平上同样表现出显著差异。采用六重串联质量标签(TMT)定量质谱进行的蛋白质组学分析首次大规模揭示了两者在代谢通路、氨基酸生物合成与降解、膜完整性、细胞耐受性和运动性等相关蛋白上的差异。
转录组数据分析显示,在三种常用宿主中共有的3882个基因中,有347个基因的表达水平发生显著改变,涉及转运、铁摄取和运动性等功能类别[10]。
5、表达优势
BL21(DE3)来源于E.coli B株系,基因型为:F- ompT gal dcm lon hsdSB(rB- mB-) λ(DE3 [lacI lacUV5-T7 gene1 ind1 sam7 nin5])。B株系与分子克隆常用的K-12株系(如DH5α、JM109)在基因组上差异明显,蛋白组成亦显著不同[11]。
Note:这与我们下述数据验证交叉反应结果一致。
目的蛋白稳定性:该菌株缺失lon(胞质ATP依赖性蛋白酶)与ompT(外膜蛋白酶),对异源蛋白的降解能力弱,外源蛋白更易稳定积累,这是其作为表达菌株的重要特性[12]。
外源质粒稳定性:hsdSB缺失使限制-修饰系统失活,外源质粒DNA不易被降解,转化效率较高。
表达强度:λDE3溶原使T7 RNA聚合酶基因整合于基因组,受lacUV5启动子调控;T7聚合酶转录效率显著高于大肠杆菌内源RNA聚合酶,可实现目的蛋白的高强度表达[3]。
6、HCP高风险表达谱
HCP表达谱方面,E.coli与CHO来源HCP的组成差异显著。CHO来源HCP的风险主要集中于免疫原性与辅料降解活性。E.coli来源HCP除蛋白组分外,还包含LPS内毒素等强免疫刺激成分,以及核酸与细胞壁碎片[13]。
其中,宿主蛋白谱中高丰度组分为外膜蛋白(OmpF、OmpC、OmpA)、肽聚糖代谢DacB、蛋白酶Hydrogenase、金属蛋白酶PqqL,此类蛋白在纯化过程中较易混入产物。文献报道的高风险因子蛋白与赛唐生物检测并分析到的风险大小有较强的相关性,提示赛唐生物覆盖度的高风险因子蛋白的分析有较强的可信度,来配合监管机构审查。典型的HCP种类见下表2:
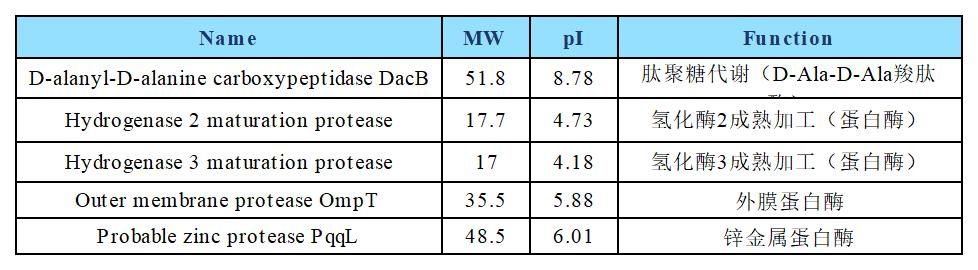
表2 E.coli高风险蛋白鉴定
数据验证
赛唐生物,继E.coli(3S),E.coli(6S),K12,DH5α HCP试剂盒成功上市后,对标CygnusF1060又完成BL21(DE3)HCP检测产品的验证,结果如下:
✅️标准曲线:0-200ng/mL,R²=0.99978,标准品S1–S5,回收率处于92%-102%区间。
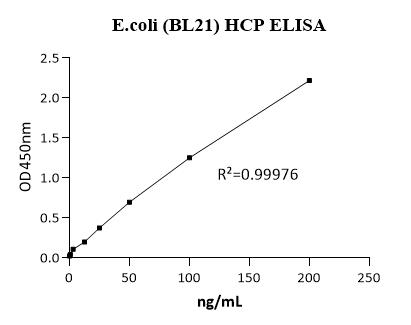
图6 BL21(DE3)HCP ELISA 标准曲线
✅️板内精密度:高、中、低三个浓度CV分别为4.6%、4.9%、8.9%,均低于10%。批间精密度:高、中、低浓度CV分别为2.1%、2.7%、1.9%,批间差异较小。
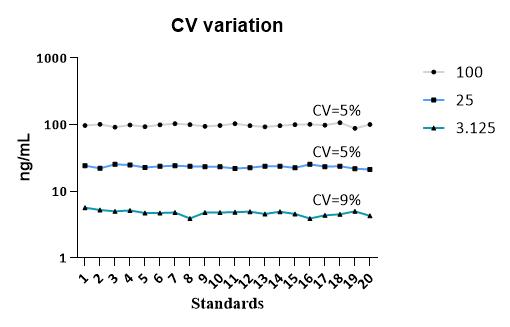
图7 BL21 HCP ELISA QC(CV)
Note:数据来源N261990-010,N261990-011。
✅️特异性:与293 HCP、毕赤酵母X-33 HCP、GS115 HCP实测交叉反应率为0,特异性良好。因为BL21本身属于大肠杆菌,与其他E.coli株系蛋白谱高度重叠,与E.coli 3S/6S HCP存在较高的同源交叉反应(见表3),符合预期。这也提示,大肠杆菌内部不同株系(B系、K-12系)HCP组成存在差异,要获得最准确的结果,应采用对应株系的专属试剂盒。
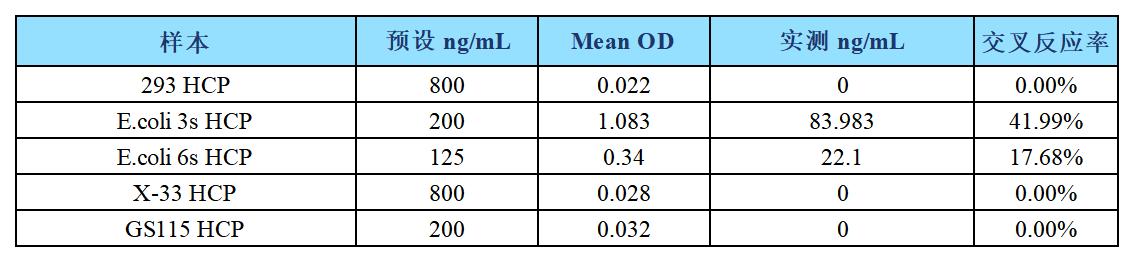
表3 BL21 HCP ELISA特异性检测
部分数据,可以参考赛唐生物与Cygnus公司对比结果(含F1060),见推文《E.coli HCP 产品性能对比分析》。
Note:终端客户部分样本检测结果,如果有较大差异,可能和菌株改造和工艺,以及药物类型有较强相关性。可联系赛唐生物技术团队解决(有较为丰富的解决手段)。
关于赛唐生物
赛唐生物位于上海张江,自2010年起专注生物医药工业检测,在宿主细胞蛋白方向深耕15年。HCP为公司核心产品线,目前开发了5大类、15个系列、40种产品,其中32种在售,覆盖的表达系统包括:CHO(G2/G3)、E.coli(3S、6S)、BL21(DE3)、DH5α、K-12、毕赤酵母(X-33、GS115)、汉逊酵母、酿酒酵母、293、Vero、Sf9和High-5等。
需要说明的是,E.coli系列HCP产品不仅限于BL21(DE3):赛唐生物同时布局了DH5α HCP与K-12 HCP。DH5α是分子克隆中最常用、亦常被用于早期工艺开发的K-12衍生株;K-12是多种生产菌株的母本菌株。二者加上BL21(DE3),基本覆盖大肠杆菌制药领域的主要菌株。
赛唐生物上市HCP产品有完整的技术链条支撑(见推文《IND/BLA申报,宿主细胞蛋白工艺专属化考虑几何?》),原材料长期稳定供应,并支持电子实验档案审查与验厂。
展望:从创新药到合成生物学,BL21的路还很长
BL21(DE3)的应用已从传统创新药生产扩展至合成生物学领域:抗体片段和纳米抗体(VHH)表达、无细胞蛋白合成(cell-free system)、代谢工程改造、生物基化学品与工业酶生产、合成疫苗抗原开发等。凡需要以大肠杆菌快速迭代的工艺,BL21(DE3)均为常用底盘菌株[14]。
菌株应用增多,质控要求随之提高:宿主改造株、诱导方式及下游工艺的任何改变,均可能影响HCP的组成与含量。监管层面,HCP检测正由“通用型试剂盒检测”向“工艺专属、覆盖度可论证”的方向发展[15]。
赛唐生物专注于宿主蛋白检测,坚持做深做精。15年下来,我们从CHO做到E.coli多株系,再做到酵母、昆虫细胞和转基因HCP,每一款产品都需要点点滴滴的打磨。BL21(DE3)、DH5α、K-12、3S、6S这些E.coli家族的产品,加上配套的覆盖度分析和技术服务,就是我们给药物安全的底线。
参考文献
[1] Schmidt FR. Recombinant expression systems in the pharmaceutical industry. Appl Microbiol Biotechnol. 2004;65:363-372.
[2] Walsh G, Walsh E. Biopharmaceutical benchmarks 2022. Nat Biotechnol. 2022;40(12):1722-1760.
[3] Studier FW, Moffatt BA. Use of bacteriophage T7 RNA polymerase to direct selective high-level expression of cloned genes. J Mol Biol. 1986;189(1):113-130.
[4] Jeong H, et al. Genome sequences of Escherichia coli B strains REL606 and BL21(DE3). J Mol Biol. 2009;394(4):644-652.
[5] Khalid S, et al. Atomistic and Coarse Grain Simulations of the Cell Envelope of Gram-Negative Bacteria: What Have We Learned? Acc Chem Res. 2019;52:180-188.
[6] Leclercq S, et al. Lipopolysaccharide core type diversity in the Escherichia coli species in association with phylogeny, virulence gene repertoire and distribution of type VI secretion systems. Microb Genom. 2021;7:13p.
[7] .Sébastien Leclercq et al.Lipopolysaccharide core type diversity in the Escherichia coli species in association with phylogeny, virulence gene repertoire and distribution of type VI secretion systems. Microb Genom. 2021;7(9):000652.
[8] Clermont O, et al. The Clermont Escherichia coli phylo-typing method revisited: improvement of specificity and detection of new phylo-groups. Environ Microbiol Rep. 2013;5(1):58-65.
[9] Phue JN, et al. Modified Escherichia coli B (BL21), a superior producer of plasmid DNA compared with Escherichia coli K (DH5alpha). Biotechnol Bioeng. 2008;101(4):831-836.
[10] Han MJ, et al. Comprehensive Analysis of Proteomic Differences between Escherichia coli K-12 and B Strains Using Multiplexed Isobaric Tandem Mass Tag (TMT) Labeling. J Microbiol Biotechnol. 2017;27(11):2028-2036.
[11] Jeong H, et al. Genome sequences of Escherichia coli B strains REL606 and BL21(DE3). J Mol Biol. 2009;394(4):644-652.
[12] Grodberg J, Dunn JJ. ompT encodes the Escherichia coli outer membrane protease that cleaves T7 RNA polymerase during purification. J Bacteriol. 1988;170(3):1245-1253.
[13] Jones M, et al. High-risk host cell proteins (HCPs): A multi-company collaborative view. Biotechnol Bioeng. 2021;118(8):2870-2885.
[14] Ferrer-Miralles N, et al. Microbial factories for recombinant pharmaceuticals. Microb Cell Fact. 2009;8:17.
[15] Herman CE, et al. Behavior of host-cell-protein-rich aggregates in antibody capture and polishing chromatography. J Chromatogr A. 2023;1702:464081.
WEB:www.bluegene.cc
www.cellgenebio.com
E-mail:sales@bluegene.cc
TEL:400-882-6373 / 021-61106433


